线粒体如何通过代谢—表观遗传轴驱动SASP?
2026-09-17
原文阅读链接:https://mp.weixin.qq.com/s/UQgvgMLdYXwhLoPSewz-zg
细胞衰老之后,并不只是停止分裂。
它们还会持续释放IL-6、IL-1β、CCL2等大量炎症因子,形成所谓的衰老相关分泌表型(senescence-associated secretory phenotype,SASP)。
过去的研究已经发现,衰老过程中线粒体损伤可以导致 mtDNA泄漏,进而激活:mtDNA → cGAS–STING → 炎症反应
但一个问题一直没有完全解决:
炎症信号已经启动了,为什么SASP基因还能持续保持高水平表达?
2026年7月29日,João F. Passos、Peter D. Adams等团队在Nature发表研究:Mitochondrial metabolism and epigenetic crosstalk drive SASP
研究发现,线粒体除了能够通过mtDNA“启动”炎症,还提供了另外一层控制:
通过代谢物改变染色质,让SASP基因真正处于可以被持续转录的状态。
线粒体同时控制了炎症的“信号启动”和“表观遗传执行”。
没有线粒体,SASP基因竟然“关上了”
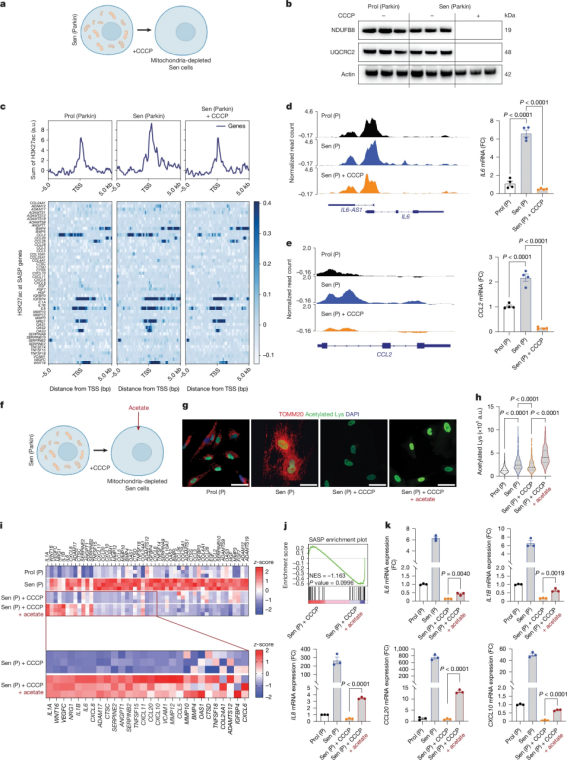
作者首先做了一个非常直接的实验:
把衰老细胞中的线粒体清除掉。
结果发现,线粒体缺失后,虽然细胞仍然处于衰老状态,但SASP相关基因明显受到抑制。
进一步的ChIP-seq显示,IL6、CCL2等SASP基因区域的H3K27ac明显下降。
而H3K27ac通常与染色质开放和活跃转录密切相关。
更关键的是,当作者补充能够生成acetyl-CoA的acetate后,组蛋白乙酰化重新增加,部分SASP基因表达也被恢复。
这说明:
线粒体影响SASP,并不只是靠ROS或者炎症信号,还通过代谢物直接影响染色质。
那么,线粒体究竟通过什么方式影响核内的组蛋白乙酰化?
作者最终锁定了一条非常清晰的代谢轴:
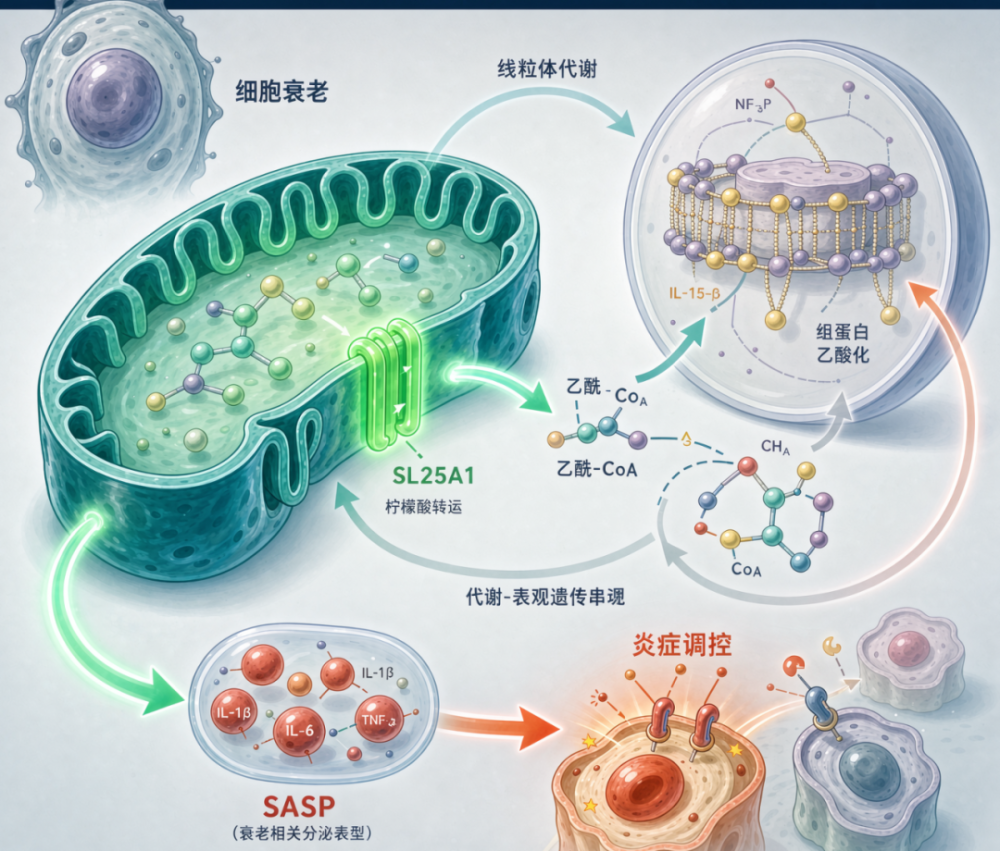
Pyruvate---线粒体TCA循环---Citrate---SLC25A1---胞质Citrate---ACLY---Acetyl-CoA---H3K27ac---SASP基因表达
其中最关键的节点之一就是:
SLC25A1
SLC25A1是线粒体内膜上的citrate transporter,负责将线粒体中的柠檬酸输出到胞质。作者发现,多个衰老模型中 SLC25A1表达均明显升高。
敲除SLC25A1后,IL6、IL8、IL1B、CCL2等SASP因子明显下降;药理学抑制SLC25A1同样可以抑制SASP。
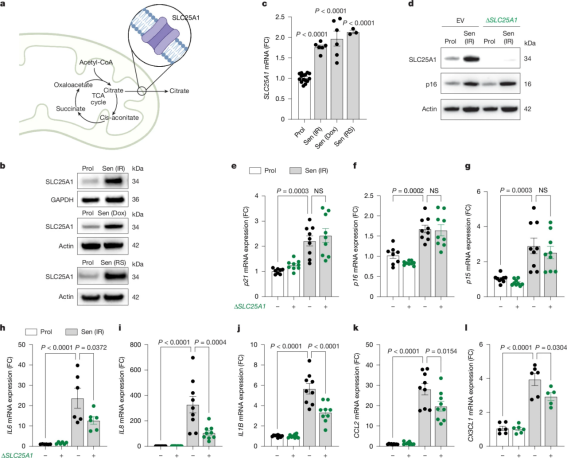
但有意思的是p16、p21以及细胞周期停滞并没有被逆转。
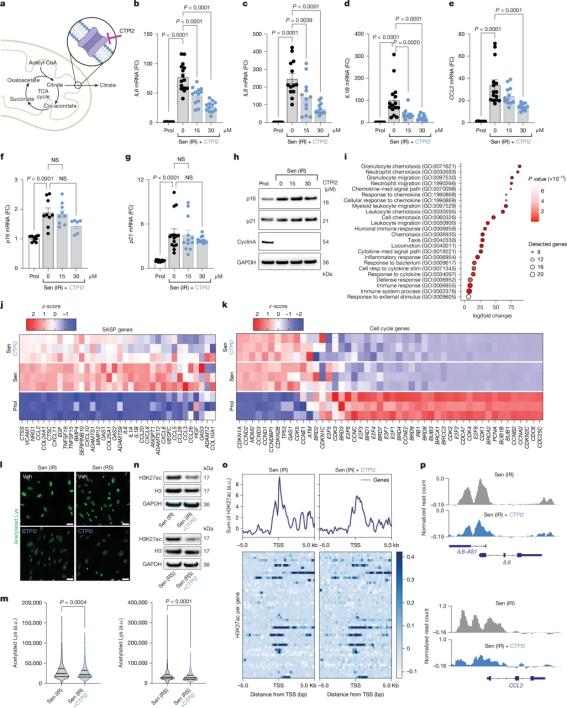
也就是说,SLC25A1抑制的不是“细胞衰老本身”,而主要是衰老细胞的炎症输出。
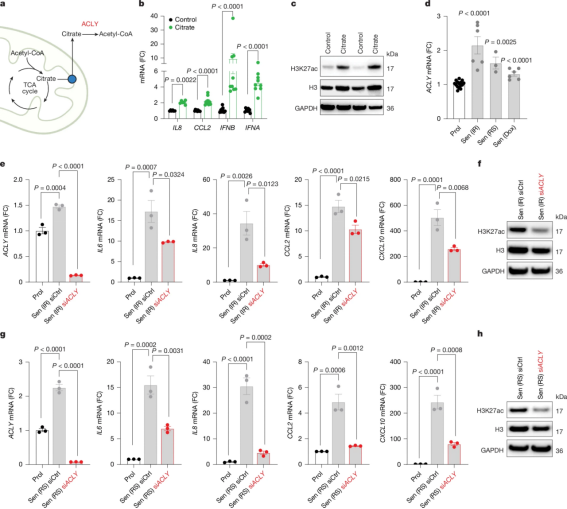
Citrate为什么这么重要?因为citrate可以通过 ACLY(ATP-citrate lyase) 被转化为acetyl-CoA。而acetyl-CoA正是组蛋白乙酰化的重要底物。
作者发现:补充citrate → H3K27ac升高 → 炎症基因表达增加
相反敲低ACLY → H3K27ac下降 → SASP明显受到抑制
于是,线粒体和细胞核之间真正建立起了一条代谢—表观遗传通路:
Mitochondrial citrate → acetyl-CoA → histone acetylation → SASP
整篇文章最关键的发现:SASP需要“两把钥匙”
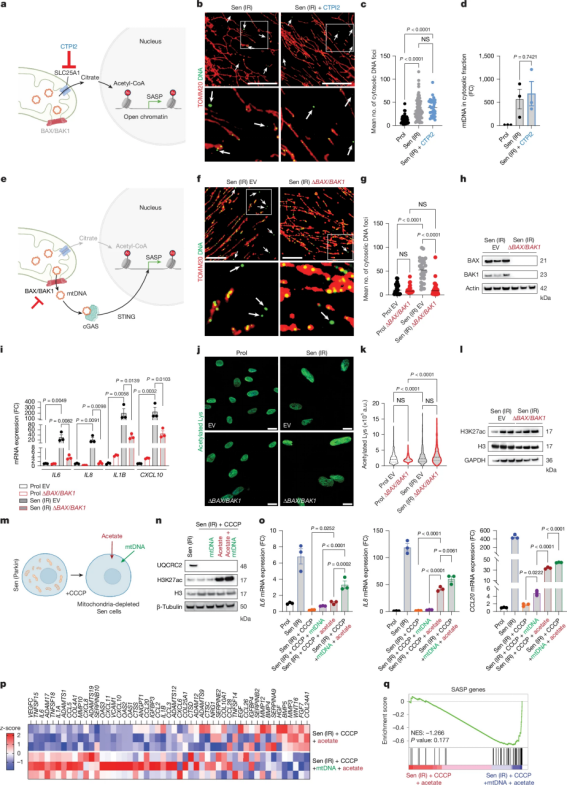
接下来作者问了一个最重要的问题:citrate–acetyl-CoA这条通路,和经典的mtDNA–cGAS–STING到底是什么关系?
结果发现二者并不是同一条通路。
抑制SLC25A1以后,胞质中的mtDNA并没有明显减少;而阻断mtDNA释放或者抑制STING,也不会影响H3K27ac。这说明:
第一条通路(mtDNA → cGAS–STING)主要负责激活炎症转录信号。
第二条通路(Citrate → SLC25A1 → ACLY → acetyl-CoA → H3K27ac)主要负责维持SASP基因区域的染色质开放。
更有意思的是,当作者同时提供mtDNA + acetate时,SASP的诱导明显强于任何一种单独处理。
因此SASP的完整启动,需要“炎症信号”和“染色质许可”同时存在.
机制建立以后,作者进一步进行了老年小鼠实验。
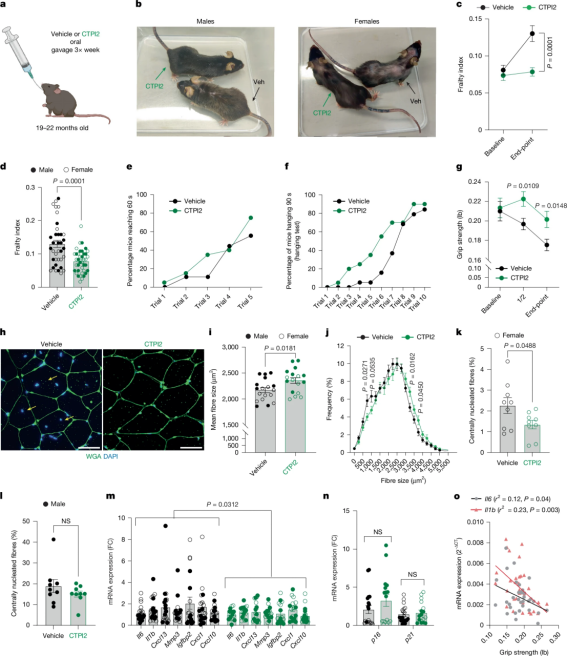
研究人员使用 SLC25A1抑制剂CTPI2 干预老年小鼠。
结果发现:
· SASP及系统性炎症下降
· 老年小鼠虚弱程度减轻
· 握力及神经肌肉功能改善
· 肌纤维状态改善
但与此同时p16和p21并没有明显降低。
也就是说,CTPI2并没有明显减少衰老细胞本身,而是让这些衰老细胞少分泌炎症因子。进一步的single-nucleus multiome分析也显示,CTPI2处理后,SASP相关区域的染色质可及性和转录活性同时下降。
这篇文章真正新在哪里?
过去谈线粒体与炎症,很多研究集中在ROS、mtDNA、cGAS–STING、NLRP3。而这篇文章提出了另一个非常值得关注的层面:
线粒体可以通过代谢物直接决定炎症基因的表观遗传状态。
对免疫研究有什么启示?
虽然这篇文章研究的是细胞衰老,但它提供的机制框架其实非常适合迁移到免疫细胞研究。现在越来越多研究发现:巨噬细胞极化、T细胞分化与耗竭、小胶质细胞激活都伴随着明显的代谢重编程。
过去我们常常研究:代谢变化→ ROS/ATP → 某条信号通路
但这篇文章提示,未来还可以进一步追问:代谢变化---关键代谢物积累---进入核内代谢池---组蛋白修饰/染色质可及性改变---稳定一种免疫细胞状态
也就是说:
代谢重编程可能不仅“激活”免疫细胞,还可以把这种状态“写进染色质”。
这可能也是免疫代谢研究下一步非常值得关注的方向。
原始文献
Martini H, Birch J, Marques FDM, et al. Mitochondrial metabolism and epigenetic crosstalk drive SASP. Nature. 2026;656:980–992.
Published: 29 July 2026
DOI: 10.1038/s41586-026-10791-2
 技术咨询: